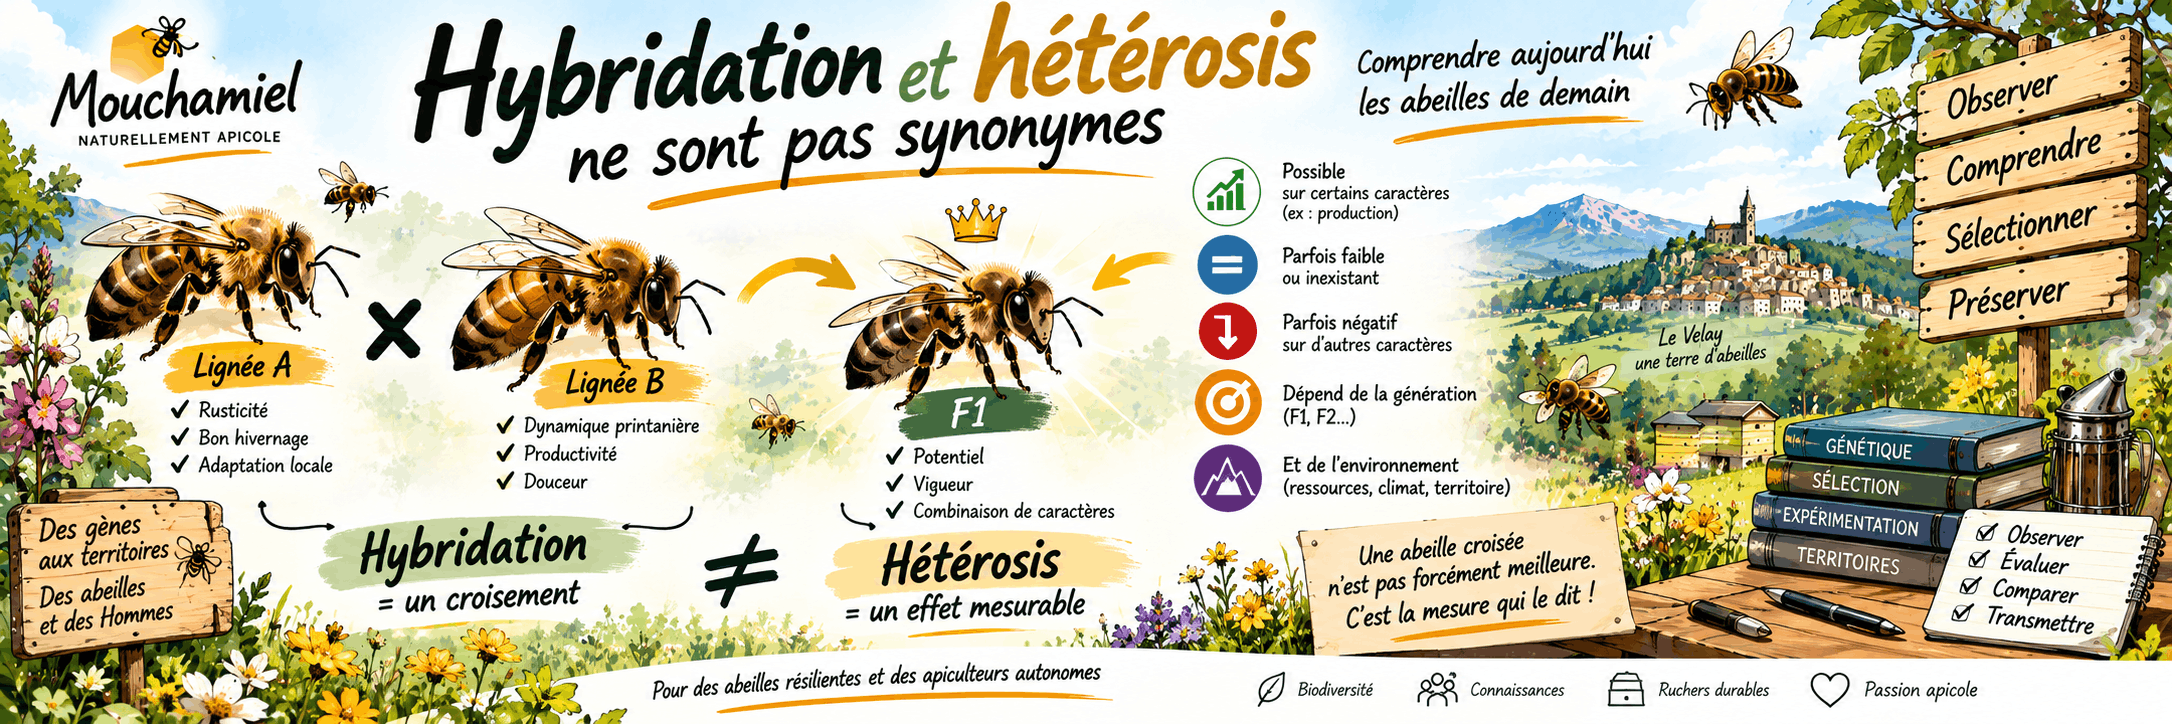
On entend souvent parler d’abeilles « hybrides », de reines F1 et de vigueur hybride comme s’il s’agissait presque de la même chose. Pourtant, l’hybridation est un croisement ; l’hétérosis est un effet éventuellement produit par ce croisement. Et cette distinction change beaucoup de choses lorsqu’on parle de sélection apicole.
Il suffit parfois d’un mot pour installer une idée fausse.
Une colonie est issue de deux origines différentes : elle serait donc « hybride ».
Elle se développe rapidement, remplit ses hausses et donne une impression de puissance : voilà l’« effet d’hétérosis ».
Puis, par un glissement presque imperceptible, on finit par penser :
hybride = vigoureuse = supérieure.
La génétique est malheureusement — ou heureusement — un peu moins docile.
Une hybridation peut produire de l’hétérosis.
Elle peut aussi n’en produire pratiquement aucun.
L’effet peut être important sur un caractère et inexistant sur un autre.
Il peut même être défavorable.
Et ce qui est observé chez la première génération ne se retrouve pas nécessairement de la même manière chez les suivantes.
La première distinction à retenir est donc extrêmement simple :
L’hybridation décrit ce que l’on fait. L’hétérosis décrit éventuellement ce que l’on obtient.
Qu’est-ce qu’une hybridation ?
Dans le langage de l’élevage, une hybridation ou un croisement consiste à accoupler des individus provenant de populations, lignées ou origines génétiquement différentes.
Chez Apis mellifera, il peut s’agir par exemple du croisement entre deux lignées sélectionnées différemment, deux populations géographiques ou deux sous-espèces.
L’hybridation décrit donc avant tout une origine génétique.
Elle ne préjuge pas du résultat.
Prenons deux lignées fictives.
La lignée A possède une bonne aptitude à l’hivernage.
La lignée B présente une forte dynamique de développement printanier.
Le croisement A × B produit une descendance.
Cette descendance est croisée.
Voilà tout ce que nous pouvons affirmer à ce stade.
Nous ne savons pas encore si elle sera meilleure, moins bonne ou simplement différente.
Et l’hétérosis ?
L’hétérosis — souvent appelé « vigueur hybride » — désigne une amélioration de certaines performances de la descendance croisée par rapport à une référence parentale.
En génétique quantitative, on peut notamment comparer la descendance à la moyenne des deux parents.
Imaginons :
- parent A : production moyenne de 20 kg ;
- parent B : production moyenne de 30 kg ;
- moyenne parentale : 25 kg ;
- descendance F1 : 32 kg.
La descendance dépasse alors la moyenne parentale de 7 kg.
On peut calculer :
Hétérosis par rapport à la moyenne parentale :
H % = ((F1 − moyenne parentale) / moyenne parentale) × 100
Dans notre exemple :
H % = ((32 − 25) / 25) × 100 = 28 %
Mais on peut utiliser une référence plus exigeante : le meilleur des deux parents.
Ici, le meilleur parent produit 30 kg.
La F1 atteint 32 kg.
L’avantage sur le meilleur parent n’est plus que :
1;border:1px solid var(--awef-toc-border,rgba(128,128,128,.3));padding:15px;margin-bottom:20px;border-radius:5px} @supports (color:color-mix(in srgb,red 50%,blue)){.awef-toc-container{background:var(--awef-toc-bg,color-mix(in srgb,currentColor 5%,transparent));border-color:var(--awef-toc-border,color-mix(in srgb,currentColor 20%,transparent))}} .awef-toc-title{color:var(--awef-toc-title,inherit);font-weight:bold;margin-bottom:10px;display:flex;gap:10px;align-items:center} .awef-toc-toggle{font-size:12px;background:transparent;color:inherit;border:1px solid rgba(128,128,128,.5);border-radius:3px;padding:2px 6px;cursor:pointer} .awef-toc-content{margin-top:5px} .awef-toc-item{margin:5px 0} .awef-toc-list,.awef-toc-flat-list{list-style:none;padding-left:0;margin:0} .awef-toc-numbered .awef-toc-flat-list{list-style:decimal;padding-left:20px} .awef-toc-list ol{list-style:decimal;padding-left:20px;margin:4px 0} .awef-toc-list li{margin-top:4px;margin-bottom:4px} .awef-toc-container a.awef-active{font-weight:bold;text-decoration:underline} .awef-subtoggle{margin-right:4px;background:transparent;color:inherit;border:1px solid rgba(128,128,128,.5);border-radius:3px;cursor:pointer;padding:0 6px;font-size:11px;line-height:16px} .awef-toc-hierarchical{list-style:none}.awef-toc-rel-depth-1{margin-left:15px}.awef-toc-rel-depth-2{margin-left:30px}.awef-toc-rel-depth-3{margin-left:45px}.awef-toc-rel-depth-4{margin-left:60px}.awef-toc-rel-depth-5{margin-left:75px}.awef-toc-rel-depth-6{margin-left:90px}.awef-toc-rel-depth-7{margin-left:105px}.awef-toc-rel-depth-8{margin-left:120px}.awef-toc-rel-depth-9{margin-left:135px}.awef-toc-rel-depth-10{margin-left:150px}.awef-toc-content{display:block;}
- 32 − 30) / 30) × 100 = 6,7 %
Cette distinction est essentielle.
Une F1 peut dépasser la moyenne de ses parents sans dépasser le meilleur d’entre eux.
Dire simplement « il y a 28 % d’hétérosis » sans préciser la référence peut donc être trompeur.
Une abeille croisée n’est donc pas forcément supérieure
C’est probablement le malentendu le plus fréquent.
Le croisement augmente certaines formes de diversité génétique et peut permettre des combinaisons favorables d’allèles.
Mais il n’existe aucune loi biologique disant :
deux populations différentes + un croisement = une abeille meilleure.
Les mécanismes proposés pour expliquer l’hétérosis sont multiples : masquage d’allèles récessifs défavorables, avantage de certaines combinaisons hétérozygotes, interactions entre gènes, etc. Aucun de ces mécanismes n’impose qu’un croisement particulier améliore tous les caractères.
L’abeille fournit d’ailleurs de très bons contre-exemples.
Une étude portant sur la production de gelée royale a comparé plusieurs croisements d’abeilles occidentales. Pour plusieurs caractères étudiés, l’hétérosis par rapport au meilleur parent était négatif. Les auteurs concluaient que le croisement ne permettait pas automatiquement d’améliorer ces caractères, même si certains assemblages parentaux restaient intéressants.
Autrement dit :
l’hybridation avait bien eu lieu. L’hétérosis favorable attendu, lui, n’était pas nécessairement au rendez-vous.
L’hétérosis n’appartient jamais à « l’abeille entière »
Voilà une autre simplification à éviter.
Dire :
« Cette souche présente de l’hétérosis »
n’est pas très précis.
La bonne question est :
de l’hétérosis pour quel caractère ?
Une combinaison génétique peut présenter un avantage pour :
- la vitesse de développement ;
- la production ;
- la survie ;
- la thermorégulation ;
- la fécondité ;
- certaines réponses immunitaires ;
tout en n’apportant aucun bénéfice sur :
- la douceur ;
- la tendance à l’essaimage ;
- la consommation hivernale ;
- la résistance à Varroa ;
- l’adaptation à un territoire particulier.
Elle pourrait même améliorer certains caractères tout en en dégradant d’autres.
C’est pourquoi la notion de « vigueur hybride » peut devenir dangereusement vague lorsqu’elle quitte le laboratoire ou le programme de sélection pour devenir un argument commercial.
Une abeille ne possède pas une jauge générale de « vigueur » située quelque part entre le thorax et l’abdomen.
Elle possède une combinaison de caractères.
Chez l’abeille, l’affaire se complique encore
Chez de nombreux animaux d’élevage, on imagine facilement un père, une mère et leur descendant F1.
Chez l’abeille, le paysage génétique est beaucoup plus intéressant.
La reine et les ouvrières sont diploïdes.
Les mâles, eux, sont normalement haploïdes : ils proviennent d’œufs non fécondés.
Une reine s’accouple en outre avec plusieurs mâles lors de ses vols nuptiaux. Les ouvrières d’une même colonie peuvent donc appartenir à plusieurs familles paternelles différentes.
Les modèles modernes de sélection apicole doivent précisément tenir compte de cette haplodiploïdie, de la polyandrie et du fait qu’une performance observée au rucher résulte du fonctionnement collectif de milliers d’ouvrières.
Cela oblige à beaucoup de prudence lorsque l’on applique directement à l’abeille le vocabulaire F1 utilisé chez le maïs, la tomate ou certains animaux domestiques.
Une « reine F1 » n’est pas une formule magique
Dans le langage apicole commercial, l’appellation F1 est parfois utilisée assez largement.
Au sens génétique strict, une génération F1 correspond à la première génération issue d’un croisement défini entre deux populations parentales.
Encore faut-il savoir précisément :
- qui est la mère ;
- quelle est son origine génétique ;
- quels mâles interviennent ;
- et dans quelles conditions les accouplements ont été contrôlés.
Or une reine naturellement fécondée peut s’accoupler avec de nombreux mâles provenant de différentes colonies.
Sans contrôle de la voie paternelle, parler d’un croisement parfaitement défini devient délicat.
Les travaux de modélisation en sélection apicole montrent d’ailleurs combien la maîtrise des accouplements est importante : dans les simulations publiées par Plate et ses collègues, l’absence de contrôle des accouplements réduisait fortement le progrès génétique obtenu par sélection.
Cela ne signifie pas qu’une reine fécondée naturellement est mauvaise.
Cela signifie seulement que :
sélectionner une mère ne revient pas à maîtriser la génétique de toute sa descendance.
Et la fameuse F2 ?
C’est souvent à ce moment-là qu’apparaît une autre légende apicole :
« La F1 est extraordinaire, la F2 devient forcément catastrophique. »
La réalité est plus subtile.
Lorsqu’on poursuit les générations après un croisement, les différentes combinaisons génétiques sont redistribuées par la reproduction.
Certains assemblages présents dans la génération précédente disparaissent, d’autres apparaissent.
On parle de ségrégation et de recombinaison.
La descendance devient généralement plus variable.
Cela signifie qu’une F2 peut produire des individus très intéressants, d’autres beaucoup moins, et de nombreux intermédiaires.
Ce n’est donc pas une génération « dégénérée ».
C’est une génération dans laquelle les cartes génétiques sont davantage rebattues.
Pour le sélectionneur, cette variabilité peut même être précieuse.
Elle fournit le matériau dans lequel il pourra rechercher de nouvelles combinaisons.
Le problème apparaît lorsque l’on attend de tous les descendants qu’ils reproduisent automatiquement le phénotype remarquable de la génération précédente.
La Buckfast : hybride, F1 ou population sélectionnée ?
L’histoire de l’abeille Buckfast est particulièrement instructive.
Le frère Adam a délibérément utilisé des croisements entre différentes origines d’abeilles, puis pratiqué pendant des décennies sélection, évaluation et accouplements contrôlés.
Buckfast Abbey décrit explicitement ce travail historique de croisement visant notamment douceur, robustesse, production et résistance à l’acariose.
Mais réduire la Buckfast à « une abeille hybride » au sens d’une simple F1 serait passer à côté de l’essentiel.
Le travail du frère Adam ne consistait pas à croiser deux abeilles une fois et à exploiter éternellement le miracle obtenu.
Il consistait à introduire des caractères, sélectionner, croiser, évaluer, éliminer et stabiliser.
La différence est fondamentale.
Un programme de sélection utilisant l’hybridation n’est pas la même chose qu’un croisement ponctuel destiné à produire de l’hétérosis.
L’hybridation peut être un outil permettant d’introduire de la diversité ou un caractère nouveau.
L’hétérosis peut être l’un des effets recherchés.
La sélection détermine ensuite ce que l’on conserve.
Pourquoi la F1 peut-elle parfois sembler spectaculaire ?
Lorsqu’on croise deux lignées relativement différenciées et bien caractérisées, la première génération peut présenter une forte hétérozygotie à de nombreux loci.
Plusieurs mécanismes peuvent alors contribuer à de meilleures performances.
Une hypothèse classique est celle de la dominance.
Chaque population peut porter certains allèles récessifs défavorables. Le croisement peut permettre à des allèles fonctionnels provenant de l’autre parent d’en masquer l’expression.
Une autre hypothèse est celle de la surdominance : pour certains loci, l’état hétérozygote lui-même pourrait présenter un avantage par rapport aux deux états homozygotes.
D’autres modèles font intervenir des interactions plus complexes entre gènes.
Ces mécanismes ne sont pas mutuellement exclusifs.
Mais là encore, ce ne sont pas des garanties.
Le croisement peut également rompre des combinaisons génétiques qui fonctionnaient particulièrement bien dans une population donnée.
La grande particularité de l’abeille : l’hétérosis peut être… social
Et c’est ici que l’histoire devient encore plus intéressante.
Une colonie d’abeilles n’est pas seulement un ensemble d’individus possédant chacun leur génome.
C’est un superorganisme.
Grâce à la polyandrie de la reine, plusieurs lignées paternelles coexistent naturellement parmi les ouvrières.
En 2007, Heather Mattila et Thomas Seeley ont montré expérimentalement que des colonies comportant davantage de diversité génétique interne pouvaient présenter de meilleures performances de développement, de butinage, de stockage et de survie hivernale que des colonies beaucoup plus homogènes.
Une étude publiée en 2025 va encore plus loin en distinguant hétérosis individuel et hétérosis social.
Les chercheurs ont constitué des colonies génétiquement différentes : certaines avec des ouvrières hybrides, donc présentant davantage d’hétérozygotie individuelle ; d’autres mélangeant des ouvrières issues de deux populations, créant une forte diversité sociale sans la même hétérozygotie individuelle.
Pour les caractères étudiés — réponse à une infection bactérienne expérimentale et maintien de la température du couvain — les deux formes de diversité amélioraient les performances par rapport aux colonies consanguines.
Voilà qui complique joliment notre formule de départ.
Chez l’abeille, il ne faut pas seulement se demander :
« L’ouvrière est-elle hybride ? »
Il faut aussi demander :
« De quelle diversité génétique dispose la colonie dans son ensemble ? »
Diversité génétique et hétérosis ne sont pourtant toujours pas synonymes
Même ici, il faut résister à un nouveau raccourci.
Une colonie très diverse n’est pas nécessairement une colonie manifestant de l’hétérosis pour tous les caractères.
La diversité constitue une propriété génétique du groupe.
L’hétérosis est une différence de performance démontrée par comparaison.
La nuance reste exactement la même.
D’ailleurs, la polyandrie peut apporter des bénéfices sans que nous ayons besoin de qualifier chacun d’eux d’hétérosis.
Des colonies issues de reines inséminées par plusieurs mâles ont notamment montré une moindre intensité de certaines maladies du couvain que des colonies issues de reines inséminées par un seul mâle.
Diversité, complémentarité des comportements, spécialisation des tâches et résilience collective peuvent se combiner.
Mais mesurer ces bénéfices demande une expérimentation.
Et l’adaptation locale dans tout cela ?
Une autre erreur serait de considérer qu’une forte vigueur rend automatiquement une abeille bien adaptée partout.
Une colonie peut démarrer rapidement, produire énormément de couvain et posséder un potentiel de production remarquable…
tout en étant mal synchronisée avec les ressources de son territoire.
Dans une étude menée en Arabie saoudite, des colonies locales d’Apis mellifera jemenitica ont mieux maintenu populations et survie que des colonies hybrides importées dans les conditions étudiées. Les auteurs relient notamment cette différence à l’adaptation des abeilles locales aux contraintes environnementales de la région.
Ce résultat ne démontre évidemment pas que « local = toujours meilleur ».
Il rappelle quelque chose de beaucoup plus intéressant :
la performance n’existe jamais indépendamment de l’environnement dans lequel elle est mesurée.
Une abeille extraordinairement dynamique dans une région à longue saison de floraison peut devenir coûteuse dans un milieu montagnard où mars promet le printemps avant qu’avril ne lui rappelle brutalement ses obligations hivernales.
L’hétérosis éventuel ne dispense donc jamais de tester l’adaptation.
Hétérosis positif, nul… ou négatif
Il est important d’aller jusqu’au bout du raisonnement.
L’effet d’un croisement peut être :
positif : la descendance dépasse la référence parentale ;
nul ou faible : elle reste proche des parents ;
négatif : elle obtient une valeur inférieure à la référence.
Des travaux sur la physiologie de vol de reines et mâles issus de lignées africaines, européennes et hybrides ont ainsi observé des hybrides intermédiaires pour plusieurs paramètres et un résultat compatible avec un hétérosis négatif pour un caractère métabolique étudié chez les reines.
L’hybridation ne constitue donc jamais, à elle seule, une preuve d’amélioration.
Pour démontrer un hétérosis, il faut mesurer.
Ce que cela change pour l’apiculteur sélectionneur
Cette distinction peut transformer notre manière de parler des colonies.
Plutôt que :
« Cette reine est hybride, elle bénéficie donc de l’hétérosis. »
il serait plus rigoureux de dire :
« Cette reine est issue de tel croisement. Sa descendance sera comparée aux lignées parentales pour déterminer si un avantage apparaît sur les caractères étudiés. »
La différence paraît académique.
Elle ne l’est absolument pas.
La première phrase transforme une hypothèse en qualité acquise.
La seconde ouvre un travail de sélection.
Il faudrait donc noter :
- l’origine maternelle ;
- l’origine paternelle lorsqu’elle est connue ;
- le mode de fécondation ;
- les performances des parents ;
- celles de la descendance ;
- les conditions environnementales ;
- et les caractères précisément évalués.
C’est précisément le type de données qu’un dispositif de suivi comme BeeNode Sélection et Apisphère pourrait un jour aider à structurer.
Ne sélectionnons pas des mots
Il existe une tentation permanente en élevage : transformer un concept génétique en étiquette.
« F1 ».
« Hybride ».
« VSH ».
« Rustique ».
« Locale ».
« Sélectionnée ».
Ces mots peuvent être parfaitement légitimes.
Mais aucun n’est, à lui seul, une mesure de qualité.
Une véritable sélection commence lorsque nous cessons de demander :
« Quelle étiquette porte cette abeille ? »
et que nous demandons :
« Que transmet-elle réellement, dans quelles conditions, et avec quelle régularité ? »
L’hybridation ouvre des possibilités ; la sélection décide de leur avenir
L’hybridation est un outil extraordinairement puissant.
Elle permet de réunir des patrimoines génétiques différents, de restaurer de la diversité, d’introduire de nouveaux caractères et parfois de produire des effets d’hétérosis remarquables.
Mais elle ne garantit aucun miracle.
L’hétérosis, de son côté, est un phénomène biologique mesurable.
Il ne constitue ni une race, ni une lignée, ni une propriété permanente attachée à une étiquette commerciale.
Et surtout, il n’existe jamais dans l’absolu.
Il existe pour un caractère, dans une population, dans une génération et dans un environnement donnés.
C’est peut-être cela qu’il faut retenir.
Une abeille croisée n’est pas nécessairement meilleure. Elle est d’abord différente.
C’est ensuite à l’observation, à la mesure et à la sélection de déterminer si cette différence mérite d’être conservée.
Et finalement, la sélection commence peut-être précisément là où cesse la fascination pour le mot « hybride ».
Pour retenir l’essentiel
Hybridation : croisement entre individus ou populations génétiquement différenciés.
Hétérozygotie : présence de deux versions différentes d’un gène à un locus chez un individu diploïde.
Hétérosis : avantage mesuré de la descendance croisée pour un caractère donné par rapport à une référence parentale.
F1 : première génération issue d’un croisement parental défini.
F2 et générations suivantes : générations dans lesquelles ségrégation et recombinaison redistribuent les combinaisons génétiques.
Sélection : choix raisonné des reproducteurs en fonction de caractères observés et, si possible, de leur capacité à les transmettre.
Et surtout :
Hybridation et hétérosis ne sont pas synonymes. L’une crée une combinaison génétique ; l’autre doit être démontré par la performance.
Quelques références
Cale G.H., Gowen J.W. (1956). Heterosis in the Honey Bee (Apis mellifera L.). Genetics, 41, 292–303.
Mattila H.R., Seeley T.D. (2007). Genetic diversity in honey bee colonies enhances productivity and fitness. Science, 317, 362–364.
Ryals D.K., Buschkoetter A.C., Given J.K., Harpur B.A. (2025). Individual and social heterosis act independently in honey bee (Apis mellifera) colonies. Journal of Heredity, 116, 54–61.
Plate M. et coll. (2019). The importance of controlled mating in honeybee breeding. Genetics Selection Evolution, 51, 74.
Liu Y.H., Chen S.L., Zhong B.X. (2001). Étude de l’aptitude à la combinaison et de l’hétérosis pour la production et la qualité de gelée royale chez Apis mellifera.
Buckfast Abbey. Histoire du programme d’élevage du frère Adam et du développement de l’abeille Buckfast.


Merci Pascal pour ce retour, qui apporte justement une nuance importante à l’article — et qui, à mon sens, ouvre…
Bonjour M. Salesses, Merci pour votre lecture attentive. Vous avez raison de signaler ce risque de confusion : l’article utilise…
Excellent article sur le rôle et l'utilité d'adhérer ou pas à un GDSA! Au GDSA07, nous n'avons pas d'agrément pharmacie…
Bonjour, merci pour votre travail. je trouve que votre chronologie ne correspond pas aux règles de l'élévage de reines. On…
Merci