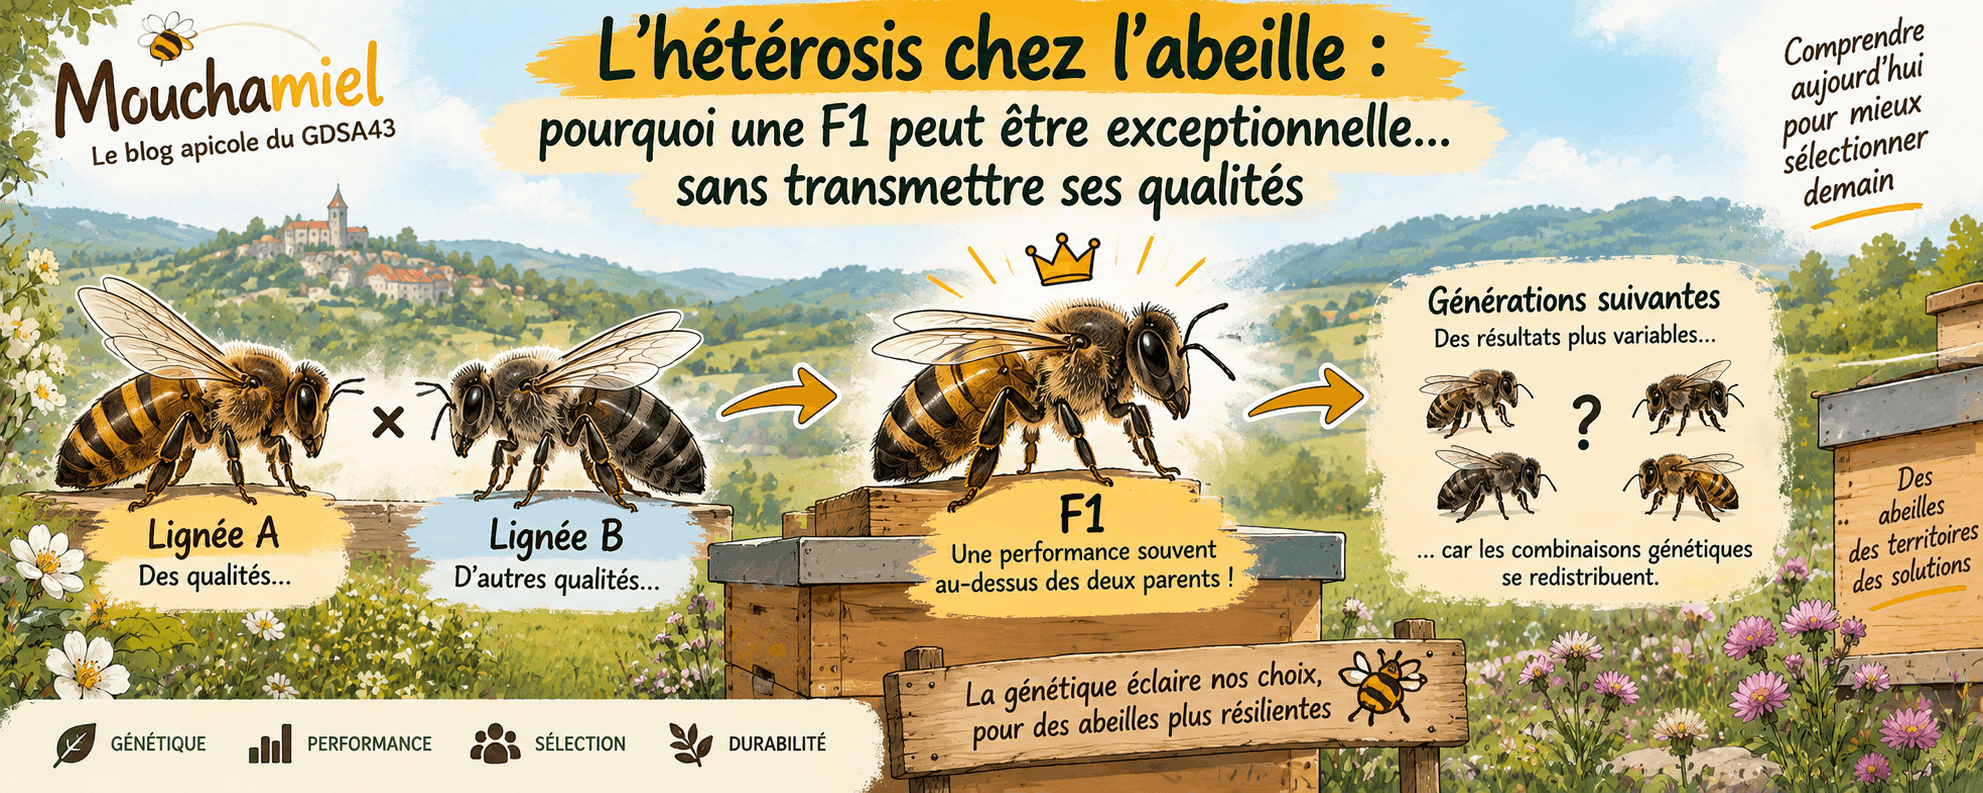
En sélection apicole, il arrive qu’une reine produise une colonie absolument remarquable : développement rapide, population importante, récoltes abondantes, excellente tenue du couvain, dynamisme impressionnant.
L’apiculteur se dit alors assez naturellement :
« Voilà ma reproductrice idéale. Je vais élever sur elle. »
Et pourtant, l’année suivante, les filles de cette reine peuvent donner des colonies beaucoup plus ordinaires, voire extrêmement variables.
Ce phénomène n’a rien de mystérieux. Il peut notamment s’expliquer par un mécanisme génétique bien connu en sélection animale et végétale : l’hétérosis, également appelé vigueur hybride.
Mais chez l’abeille, les choses deviennent particulièrement intéressantes, car la génétique de Apis mellifera, son système haplodiploïde, la polyandrie de la reine et le fonctionnement collectif de la colonie compliquent sérieusement la notion pourtant apparemment simple de « F1 ».
Qu’est-ce que l’hétérosis ?
L’hétérosis désigne l’amélioration de certaines performances observée chez les descendants issus du croisement de populations ou de lignées génétiquement différentes.
Imaginons deux lignées :
- une lignée A ;
- une lignée B.
On réalise le croisement :
A × B → F1
Supposons, pour simplifier, que la lignée A produise en moyenne 25 kg de miel par colonie et la lignée B 30 kg.
La moyenne des deux parents est donc :
(25 + 30) / 2 = 27,5 kg
Si la descendance issue du croisement atteint 35 kg, elle dépasse largement la moyenne des deux populations parentales.
On peut alors calculer l’hétérosis par rapport à la moyenne parentale :
H (%) = [(F1 − moyenne des parents) / moyenne des parents] × 100
Dans notre exemple :
H = [(35 − 27,5) / 27,5] × 100 ≈ 27 %
Le croisement présente donc ici un effet d’hétérosis important.
Attention toutefois à une confusion fréquente :
hybridation et hétérosis ne sont pas synonymes.
Une hybridation est simplement un croisement entre deux ensembles génétiques différents.
L’hétérosis est un résultat possible de ce croisement.
Un hybride peut être meilleur que ses parents, semblable à eux… ou moins performant pour certains caractères.
Pourquoi le croisement peut-il produire cette vigueur ?
Plusieurs mécanismes génétiques peuvent participer à l’hétérosis.
1. Le masquage de certains allèles récessifs défavorables
Dans une population relativement fermée ou fortement sélectionnée, certains allèles récessifs défavorables peuvent devenir plus fréents à l’état homozygote.
Le croisement avec une population génétiquement différente peut apporter d’autres versions des mêmes gènes.
Très schématiquement :
AA × aa → Aa
Chez la descendance, l’allèle fonctionnel d’un parent peut masquer l’effet défavorable d’un allèle récessif provenant de l’autre.
Le croisement réduit ainsi l’expression de certains effets liés à la consanguinité.
2. Certaines associations génétiques peuvent être particulièrement favorables
Les performances d’un organisme ne résultent pas seulement de l’addition indépendante de milliers de gènes.
Des interactions existent entre eux.
Certaines associations d’allèles provenant de deux populations différentes peuvent donc produire un phénotype particulièrement performant.
C’est l’une des raisons pour lesquelles deux lignées moyennes prises séparément peuvent parfois donner une excellente combinaison lorsqu’elles sont croisées.
En sélection, on parle alors notamment de capacité de combinaison.
L’hétérosis existe-t-il réellement chez l’abeille ?
Oui.
Le phénomène est étudié chez Apis mellifera depuis plusieurs décennies, et des travaux récents permettent même de distinguer deux dimensions particulièrement intéressantes :
- l’hétérosis individuel, lié notamment à l’hétérozygotie des individus ;
- l’hétérosis social, lié à la diversité génétique présente à l’intérieur même de la colonie.
Une étude expérimentale publiée en 2024 a ainsi comparé des colonies consanguines, des colonies hybrides et des colonies constituées de groupes génétiquement différents. Les auteurs ont observé des avantages associés tant à l’hybridation individuelle qu’à la diversité génétique sociale, notamment lors d’un défi bactérien et pour la régulation thermique du couvain.
Cette notion d’hétérosis social est particulièrement intéressante en apiculture.
Car une colonie d’abeilles n’est pas un simple rassemblement d’individus.
Elle fonctionne comme un superorganisme.
Chez l’abeille, la colonie est une mosaïque génétique
C’est ici que l’application des notions classiques de F1 et de F2 devient beaucoup plus délicate qu’avec du maïs ou certains animaux domestiques.
Une reine est diploïde :
2n = 32 chromosomes
Le faux-bourdon, lui, est haploïde :
n = 16 chromosomes
Il provient normalement d’un œuf non fécondé.
Mais surtout, une reine ne s’accouple généralement pas avec un seul mâle.
Elle réalise plusieurs accouplements au cours de ses vols nuptiaux et conserve ensuite dans sa spermathèque le sperme provenant de nombreux faux-bourdons.
Les ouvrières d’une même colonie possèdent donc :
- la même mère ;
- mais potentiellement des pères différents.
La colonie est ainsi composée de plusieurs patrilignées, c’est-à-dire de groupes de demi-sœurs partageant le même père.
Cette diversité n’est probablement pas un accident de l’évolution.
Des travaux expérimentaux ont montré que l’augmentation de la diversité génétique intracoloniale peut notamment contribuer à réduire la gravité de certaines maladies et améliorer certaines performances collectives.
La diversité génétique peut améliorer le fonctionnement du superorganisme
Dans une colonie génétiquement diversifiée, toutes les ouvrières ne présentent pas exactement les mêmes seuils de réponse comportementale.
Certaines peuvent être davantage prédisposées à :
- détecter du couvain anormal ;
- ventiler ;
- récolter du pollen ;
- récolter du nectar ;
- assurer la thermorégulation ;
- défendre la colonie ;
- entreprendre certaines tâches plus précocement ;
- réagir à certains agents pathogènes.
Cette diversité peut rendre le système collectif plus robuste.
Des expériences sur la polyandrie ont notamment montré des relations entre diversité génétique intracoloniale, résistance aux maladies, fonctionnement du butinage et performances collectives.
Cela conduit à une idée essentielle :
la diversité génétique peut être utile non seulement à chaque abeille, mais également au fonctionnement de la société tout entière.
D’où la notion d’hétérosis social.
Alors, une reine F1, qu’est-ce que c’est exactement ?
C’est là que le vocabulaire commercial peut devenir trompeur.
Dans son sens génétique classique, une F1 correspond à la première génération issue du croisement contrôlé de deux lignées ou populations parentales définies.
Par exemple :
Lignée A ♀ × Lignée B ♂ → F1
Mais que se passe-t-il lorsqu’une reine provenant de la lignée A part se féconder librement avec quinze ou vingt mâles dont on ignore la généalogie ?
On connaît éventuellement la mère.
Mais on ne maîtrise pratiquement pas la moitié paternelle de la génétique des ouvrières.
Parler de « F1 » devient alors beaucoup moins rigoureux.
Une reine vendue sous l’appellation F1 peut parfaitement être excellente, mais l’apiculteur devrait toujours pouvoir demander :
F1 de quelles lignées, et fécondée par quels mâles ?
Pourquoi la F1 peut-elle être spectaculaire ?
Supposons une lignée A sélectionnée depuis plusieurs générations pour :
- la douceur ;
- la faible tendance à l’essaimage ;
- la tenue au cadre ;
- la régularité du couvain.
Et une lignée B sélectionnée pour :
- le comportement hygiénique ;
- le VSH ;
- la dynamique de printemps ;
- la capacité de production.
Le croisement :
A × B
peut éventuellement produire une descendance associant plusieurs qualités provenant des deux populations.
À cette complémentarité génétique peut s’ajouter un effet d’hétérosis.
On obtient alors une colonie qui semble extraordinaire :
vigueur + population + production + hygiène + dynamisme
L’apiculteur tient peut-être une excellente colonie de production.
Mais possède-t-il pour autant une excellente reproductrice ?
Pas nécessairement.
Et toute la difficulté de la sélection est là.
Le piège : confondre performance et valeur génétique
Une colonie extrêmement performante présente un phénotype remarquable.
Mais le phénotype résulte de plusieurs composantes :
Phénotype = génétique + environnement + interactions + effet colonie
À cela s’ajoutent :
- la génétique de la reine ;
- celle des mâles ;
- la diversité des patrilignées ;
- l’âge et la qualité physiologique de la reine ;
- l’environnement ;
- la miellée ;
- la pression sanitaire ;
- le climat ;
- la conduite apicole.
Une colonie exceptionnelle peut donc devoir une partie de son excellence à une combinaison génétique particulièrement heureuse.
Mais une combinaison exceptionnelle n’est pas nécessairement facilement reproductible.
C’est pourquoi :
une excellente colonie n’est pas automatiquement une excellente souche de sélection.
Pourquoi les filles d’une excellente F1 peuvent-elles décevoir ?
Reprenons une représentation extrêmement simplifiée :
AA × aa → Aa
La première génération est homogène pour ce locus :
F1 = Aa
Mais si cette génération est reproduite, les allèles se redistribuent.
On peut retrouver :
AA – Aa – aa
C’est la ségrégation génétique.
Avec un organisme réel, ce ne sont évidemment pas un mais des milliers de loci qui sont concernés.
Les associations favorables présentes chez la F1 peuvent donc être recombinées et redistribuées à la génération suivante.
Les descendants deviennent plus variables.
Certains pourront être excellents.
D’autres moyens.
D’autres médiocres.
C’est ce qui explique qu’une descendance de F1 puisse se révéler beaucoup moins homogène que prévu.
Et chez l’abeille, la F2 est encore plus difficile à définir
Chez une espèce où chaque femelle serait fécondée par un seul mâle parfaitement identifié, le schéma F1 → F2 serait relativement simple.
Chez l’abeille, une fille issue d’une reine F1 peut partir en fécondation naturelle et rencontrer de nombreux mâles appartenant à des populations différentes.
On obtient donc rapidement un véritable brassage génétique.
C’est pourquoi les termes :
F1, F2, F3…
doivent être utilisés avec prudence lorsque les fécondations ne sont pas contrôlées.
Pour maîtriser réellement une combinaison génétique, il faut agir également sur la voie paternelle.
D’où l’intérêt de :
- stations de fécondation isolées ;
- ruchers producteurs de mâles ;
- saturation de zone en faux-bourdons sélectionnés ;
- îles de fécondation ;
- insémination instrumentale.
La sélection d’une reine sans sélection des mâles revient, pour simplifier quelque peu, à essayer d’écrire un livre en ne maîtrisant qu’une page sur deux.
Hétérosis et sélection VSH : attention au faux ami
Cette distinction devient particulièrement importante lorsque l’on travaille sur des caractères comme :
- le comportement hygiénique ;
- le VSH (Varroa Sensitive Hygiene) ;
- la limitation de la reproduction de Varroa destructor ;
- le grooming ;
- la résistance ou tolérance aux maladies.
Une colonie très vigoureuse peut sembler remarquablement résistante à Varroa simplement parce qu’elle possède :
- une énorme population ;
- une dynamique de renouvellement importante ;
- une excellente vitalité générale.
Cela ne signifie pas automatiquement qu’elle possède une forte valeur génétique transmissible pour le VSH.
Inversement, une colonie moins spectaculaire sur le plan de la production peut posséder une caractéristique comportementale stable et hautement transmissible particulièrement intéressante pour un programme de sélection.
Il faut donc distinguer :
performance observée
et
valeur génétique transmissible.
C’est probablement l’une des distinctions les plus importantes de toute sélection apicole sérieuse.
Le pin-test ne suffit donc pas à désigner une reproductrice
Prenons le comportement hygiénique.
Un excellent résultat au pin-test constitue une information précieuse.
Mais il représente d’abord une mesure du phénotype de la colonie testée à un moment donné.
Pour démontrer que le caractère est réellement intéressant pour la sélection, il faut idéalement observer également :
- les performances répétées de cette colonie ;
- les colonies apparentées ;
- les filles de la reine ;
- éventuellement ses sœurs ;
- les performances des générations suivantes.
On passe alors de :
« cette colonie est bonne »
à :
« cette famille transmet régulièrement ce caractère ».
Et ce changement de perspective marque précisément le passage de l’élevage de reines à la sélection génétique.
Il faut donc tester les descendances
La vraie question d’un sélectionneur n’est pas seulement :
Quelle est ma meilleure colonie ?
Elle devient :
Quelles colonies produisent régulièrement de bonnes descendances ?
La différence est considérable.
Une reproductrice véritablement intéressante est une reine dont les descendants conservent statistiquement les qualités recherchées.
Cela suppose :
- des mesures ;
- des comparaisons ;
- plusieurs colonies ;
- plusieurs générations ;
- une généalogie ;
- autant que possible une connaissance de la voie mâle.
Une colonie exceptionnellement productive une année constitue une observation.
Une famille produisant régulièrement des colonies performantes constitue déjà une information génétique.
L’hétérosis est donc un outil, pas une méthode de sélection à lui seul
Il serait absurde de considérer l’hétérosis comme quelque chose de négatif.
Il peut être extrêmement intéressant pour produire des colonies commerciales performantes.
On pourrait même imaginer deux niveaux complémentaires dans un programme apicole :
Un noyau de sélection
Dans lequel on cherche :
- la stabilité ;
- l’héritabilité ;
- la généalogie ;
- la reproductibilité des caractères ;
- le maintien de différentes lignées.
Un niveau de production
Dans lequel certaines lignées sélectionnées sont croisées pour rechercher :
- complémentarité ;
- vigueur ;
- production ;
- robustesse.
Autrement dit :
on stabilise les lignées pour pouvoir ensuite exploiter intelligemment leurs croisements.
C’est exactement ce qui différencie une hybridation organisée d’un métissage aléatoire.
Une F1 exceptionnelle peut donc être exactement ce qu’on voulait obtenir
Il ne faudrait surtout pas conclure qu’une F1 est mauvaise parce que ses qualités ne sont pas intégralement reproductibles.
Si l’objectif était de produire une colonie extraordinairement performante, le croisement a parfaitement rempli son rôle.
La difficulté apparaît seulement lorsqu’on confond :
une colonie destinée à produire
avec
une colonie destinée à reproduire.
Une colonie F1 peut être remarquable comme machine biologique de production.
Mais une lignée de sélection doit démontrer autre chose :
sa capacité à transmettre durablement les caractères recherchés.
Une leçon particulièrement importante pour la sélection apicole
L’hétérosis nous oblige finalement à distinguer trois niveaux :
1. Le phénotype
Ce que nous observons dans la ruche.
2. Le génotype
Le patrimoine génétique qui participe à la production de ce phénotype.
3. La valeur génétique transmissible
La part de cette performance qui pourra réellement être retrouvée chez les descendants.
Et ces trois notions ne sont pas interchangeables.
On peut donc résumer le problème par une formule volontairement simple :
La meilleure ruche du rucher n’est pas nécessairement la meilleure reproductrice du rucher.
Pour savoir laquelle mérite réellement de devenir souche, il faut observer non seulement ce qu’elle fait…
mais aussi ce que font ses filles.
En conclusion
L’hétérosis, ou vigueur hybride, constitue l’un des mécanismes susceptibles d’expliquer les performances parfois spectaculaires de certaines colonies issues de croisements.
Chez l’abeille, cette question prend une dimension supplémentaire en raison :
- de l’haplodiploïdie ;
- de la polyandrie de la reine ;
- des multiples patrilignées présentes dans la colonie ;
- du fonctionnement de la colonie comme superorganisme ;
- de l’importance de la diversité génétique intracoloniale.
Une hybridation bien conçue peut donc produire une colonie extrêmement performante.
Mais cette performance ne doit jamais être confondue avec une garantie de transmission génétique.
Pour l’apiculteur sélectionneur, la question essentielle n’est finalement pas :
« Quelle est ma meilleure colonie ? »
mais :
« Quelle famille produit durablement les meilleures colonies ? »
Et cette nuance change presque tout.
À retenir
Hybridation : croisement de populations ou lignées différentes.
Hétérosis : avantage de performance pouvant résulter de ce croisement.
F1 : première génération d’un croisement défini — notion à employer prudemment en apiculture lorsque les mâles ne sont pas contrôlés.
Ségrégation : redistribution des caractères génétiques dans les générations suivantes.
Polyandrie : accouplement naturel de la reine avec plusieurs faux-bourdons.
Patrilignée : groupe d’ouvrières ayant la même reine pour mère et le même faux-bourdon pour père.
Hétérosis social : avantage collectif pouvant résulter de la diversité génétique entre les individus constituant une colonie.
Valeur génétique : aptitude d’un reproducteur à transmettre les caractères recherchés à sa descendance.
La sélection commence réellement lorsque l’on cesse de sélectionner uniquement des ruches pour commencer à sélectionner des familles d’abeilles.
En résumé : les principales formules de l’hétérosis
Pour quantifier l’effet d’un croisement, on compare généralement la performance de la génération F1 à celle de ses deux populations parentales.
Soit :
- P1 = performance moyenne de la première lignée parentale ;
- P2 = performance moyenne de la seconde lignée parentale ;
- F1 = performance moyenne de la première génération issue du croisement.
1. La moyenne des deux parents
La première valeur à calculer est la moyenne parentale, c’est-à-dire la moyenne des performances des deux populations que l’on croise.
MP = (P1 + P2) / 2
Exemple :
P1 = 25 kg
P2 = 30 kg
MP = (25 + 30) / 2 = 27,5 kg
La performance moyenne des deux populations parentales est donc ici de 27,5 kg.
2. L’hétérosis absolu
L’hétérosis absolu correspond à l’écart entre la performance observée de la F1 et la moyenne de ses deux parents.
H = F1 − MP
Ce qui peut également s’écrire :
H = F1 − [(P1 + P2) / 2]
Si notre génération F1 produit en moyenne 35 kg :
H = 35 − 27,5 = 7,5 kg
La F1 produit donc ici 7,5 kg de plus que la moyenne de ses deux parents.
3. L’hétérosis relatif
L’hétérosis est généralement plus parlant lorsqu’il est exprimé en pourcentage. On rapporte alors l’avantage observé à la moyenne parentale.
H (%) = [(F1 − MP) / MP] × 100
Soit, sous sa forme développée :
H (%) = {F1 − [(P1 + P2) / 2]} / [(P1 + P2) / 2] × 100
Dans notre exemple :
H (%) = [(35 − 27,5) / 27,5] × 100
H ≈ 27,3 %
La génération F1 présente donc un hétérosis d’environ 27 % par rapport à la moyenne parentale.
4. La F1 dépasse-t-elle également le meilleur parent ?
Dépasser la moyenne des deux parents est intéressant. Mais, en sélection, une autre comparaison peut être encore plus instructive : la F1 dépasse-t-elle aussi le meilleur des deux parents ?
On définit d’abord :
Pmax = meilleur des deux parents
Puis :
HMP (%) = [(F1 − Pmax) / Pmax] × 100
Dans notre exemple, le meilleur parent produit 30 kg alors que la F1 en produit 35 :
HMP (%) = [(35 − 30) / 30] × 100
HMP ≈ 16,7 %
La F1 dépasse donc le meilleur parent d’environ 16,7 %.
5. Le schéma génétique simplifié : pourquoi la F1 peut-elle perdre son homogénéité ?
Pour comprendre pourquoi certaines qualités d’une F1 peuvent se disperser dans les générations suivantes, prenons un exemple volontairement simplifié portant sur un seul locus.
Deux lignées homozygotes sont croisées :
AA × aa
La première génération obtenue est :
F1 = Aa
Tous les descendants sont ici hétérozygotes pour le locus considéré.
Si l’on croise ensuite deux individus hétérozygotes :
Aa × Aa
On obtient théoriquement :
AA – Aa – Aa – aa
Soit :
- 25 % AA ;
- 50 % Aa ;
- 25 % aa.
Cette redistribution des allèles correspond à la ségrégation génétique.
Dans un organisme réel, le phénomène est évidemment beaucoup plus complexe : des milliers de loci interviennent simultanément.
Et chez l’abeille, il faut encore tenir compte du fait que la reine est polyandre : elle s’accouple avec plusieurs faux-bourdons. Une colonie comprend donc plusieurs patrilignées.
Le petit modèle AA × aa reste néanmoins très utile pour comprendre pourquoi une combinaison génétique particulièrement favorable présente chez une F1 peut être redistribuée dans les générations suivantes.
6. Performance observée et valeur génétique : deux choses différentes
En sélection, on peut représenter de manière très simplifiée la performance observée d’un individu ou d’une colonie par la relation suivante :
P = G + E + (G × E)
avec :
- P = phénotype, c’est-à-dire la performance observée ;
- G = composante génétique ;
- E = effets de l’environnement ;
- G × E = interaction entre le patrimoine génétique et les conditions environnementales.
Chez l’abeille, cette représentation doit être considérée comme une simplification pédagogique. La performance de la colonie dépend également de nombreux phénomènes collectifs :
- la génétique de la reine ;
- la génétique des différents faux-bourdons ;
- la diversité des patrilignées ;
- les interactions entre ouvrières ;
- la structure démographique de la colonie ;
- l’état sanitaire ;
- les ressources disponibles ;
- les conditions climatiques ;
- et la conduite de l’apiculteur.
Tableau récapitulatif
| Mesure | Formule | Signification |
|---|---|---|
| Moyenne parentale | MP = (P1 + P2) / 2 | Performance moyenne des deux populations parentales |
| Hétérosis absolu | H = F1 − MP | Gain brut de la F1 par rapport à la moyenne parentale |
| Hétérosis relatif | H (%) = [(F1 − MP) / MP] × 100 | Gain de la F1 exprimé en pourcentage de la moyenne parentale |
| Dépassement du meilleur parent | HMP (%) = [(F1 − Pmax) / Pmax] × 100 | Mesure le gain de la F1 par rapport au parent le plus performant |
À retenir
Les mathématiques permettent de mesurer l’hétérosis, mais elles ne doivent pas conduire à confondre performance et transmission génétique.
Une F1 qui dépasse fortement ses deux parents peut être une colonie exceptionnelle de production. Cela ne signifie pas automatiquement que ses filles reproduiront la même performance.
Pour le sélectionneur apicole, l’information décisive reste donc la performance des descendances.


