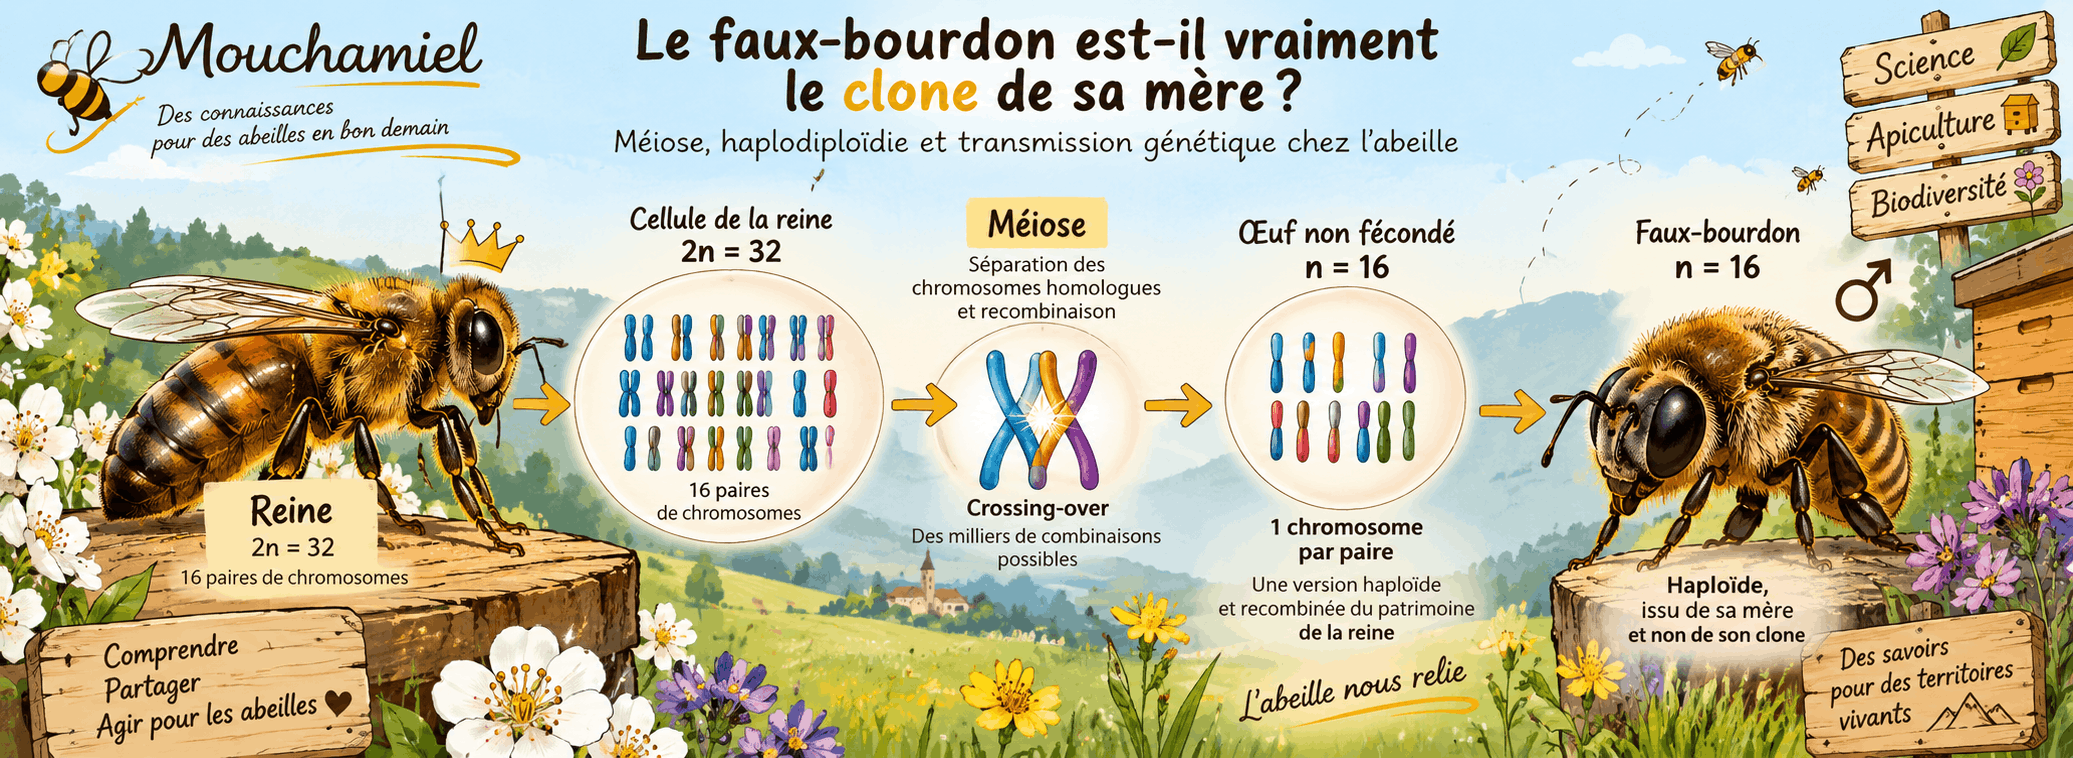
On lit souvent que le faux-bourdon serait le « clone génétique » de sa mère parce qu’il naît d’un œuf non fécondé. La formule est séduisante, mais elle est inexacte. La reine possède 32 chromosomes, organisés en 16 paires, tandis que le mâle n’en possède que 16. Entre les deux intervient un mécanisme essentiel : la méiose, avec séparation des chromosomes homologues et recombinaison génétique. Le faux-bourdon ne reçoit donc pas une copie complète de sa mère, mais une version haploïde et recombinée de son patrimoine génétique. Comprendre ce mécanisme permet d’éclairer à la fois l’haplodiploïdie de l’abeille, la transmission des caractères et le rôle particulier des mâles en sélection apicole.
Comprendre pourquoi le mâle de l’abeille, issu d’un œuf non fécondé, ne possède que 16 chromosomes alors que la reine en possède 32.
Il est exact de dire que 100 % de son patrimoine nucléaire provient de sa mère, puisqu’il naît d’un œuf non fécondé. Mais il ne reçoit qu’un exemplaire de chacun des 16 chromosomes, choisi et recombiné lors de la méiose.
La reine possède :
soit 16 paires de chromosomes homologues.
Le faux-bourdon possède :
soit un seul chromosome de chacune de ces 16 catégories.
La clé, c’est donc la méiose.

Lorsqu’une reine fabrique ses ovules, elle ne prend pas simplement « la moitié gauche » de ses 32 chromosomes. Ses chromosomes homologues se séparent et, surtout, peuvent échanger des fragments par recombinaison génétique ou crossing-over.
Schématiquement, imaginons que la reine possède une paire de chromosomes :
Chromosome d'origine maternelle : A────────B────────C

Chromosome d'origine paternelle : a────────b────────c
Après recombinaison, un ovule pourrait recevoir quelque chose comme :
A────────b────────cet un autre :
a────────B────────CChaque œuf non fécondé contient donc une combinaison particulière du patrimoine de la reine.
S’il se développe sans fécondation, cet œuf donne un faux-bourdon.
Ainsi :
Reine
32 chromosomes
16 paires
        │
        │ méiose + recombinaison
        ↓
œuf non fécondé
16 chromosomes
        │
        ↓
Faux-bourdon
16 chromosomes
Deux frères faux-bourdons ne sont donc pas identiques
C’est probablement le point le plus intéressant pour un article.
Une reine peut produire des milliers de mâles, mais chacun peut transporter une combinaison différente de ses gènes.
Ils ont tous :
- la même mère ;
- aucun père ;
- 100 % de leur ADN nucléaire provenant de cette mère ;
mais ils ne sont normalement pas génétiquement identiques entre eux.
Et ils ne sont évidemment pas identiques à leur mère puisqu’ils ne possèdent qu’un seul jeu chromosomique.
La formulation exacte serait donc :
Le faux-bourdon n’est pas le clone de sa mère ; il représente une version haploïde et recombinée de son patrimoine génétique.
Cette phrase vaut presque à elle seule le chapô de l’article.
Là où cela devient fascinant pour la sélection apicole
Le faux-bourdon est haploïde. Il ne possède donc qu’une seule version de chaque locus.
Chez une ouvrière ou une reine diploïde, on peut avoir :
A / aUn allèle récessif a peut éventuellement être masqué par A.
Chez le mâle :
aIl n’y a rien pour le masquer.
C’est une particularité majeure de la génétique des Hyménoptères.
Et cela signifie que les mâles constituent en quelque sorte une expression directe d’une partie du patrimoine génétique maternel.
Et voici le paradoxe encore plus intéressant
Le faux-bourdon n’est pas un clone de sa mère.
Mais une fois le faux-bourdon constitué, ses spermatozoïdes sont beaucoup plus proches génétiquement les uns des autres que ne le seraient ceux d’un mâle diploïde classique.
Pourquoi ?
Parce que le faux-bourdon est déjà haploïde.
Il n’a pas :
A / aà redistribuer.
Il possède seulement :
ALa production des spermatozoïdes chez l’abeille mâle suit donc un mécanisme particulier adapté à l’haploïdie, sans nouvelle ségrégation classique comparable à celle d’un organisme diploïde.
Cela conduit à une conséquence spectaculaire :
un faux-bourdon transmet pratiquement la même information génétique à toutes les filles qu’il féconde.
En revanche, deux faux-bourdons issus de la même reine peuvent transmettre des patrimoines sensiblement différents.
Et là, nous touchons directement à votre précédent article sur l’hétérosis et à la sélection des lignées.
Exemple
Une reine sélectionnée produit trois mâles :
                  REINE
                   │
          ┌────────┼────────┐
          ↓        ↓        ↓
        mâle 1   mâle 2   mâle 3
          │        │        │
       génome A  génome B  génome C
Les trois patrimoines proviennent exclusivement de la reine.
Mais la méiose les a redistribués.
Le mâle 1 peut donc transmettre une combinaison particulièrement favorable concernant certains caractères, tandis que le mâle 2 en transmet une autre.
Cela explique aussi pourquoi dire :
« J’ai mis des mâles issus d’une excellente reine »
est beaucoup moins précis génétiquement que cela n’en a l’air.
Ils sont frères, mais ils ne transportent pas nécessairement exactement le même assortiment d’allèles.
Et il y a matière à un excellent article
Je lui donnerais même un titre volontairement interrogatif :
« Le faux-bourdon est-il vraiment le clone de sa mère ? »
Avec comme sous-titre :
« 32 chromosomes chez la reine, 16 chez le mâle : comprendre l’haplodiploïdie de l’abeille »
L’article permettrait ensuite d’enchaîner très naturellement :
32 → méiose → 16 → parthénogenèse → faux-bourdon → transmission paternelle → conséquences pour la sélection.
Et surtout, il permettrait d’expliquer une chose assez extraordinaire : chez l’abeille, un mâle n’a pas de père, mais il peut avoir un grand-père.
Car les chromosomes qu’il reçoit de sa mère proviennent eux-mêmes des deux parents de cette reine.
C’est une excellente porte d’entrée vers la génétique apicole, et probablement un article plus accessible que celui sur l’hétérosis tout en préparant parfaitement sa compréhension.


